A finales de septiembre de 2026, el equipo de Ciencias de la Vida de Anthropic publicó un estudio de enorme impacto metodológico y biológico: “Autonomous AI agents discover reverse transcriptases with tandem repeat arrays” (Yoon et al., 2026). La noticia desató de inmediato una ola de titulares sensacionalistas asegurando que la inteligencia artificial había “creado un nuevo CRISPR”.
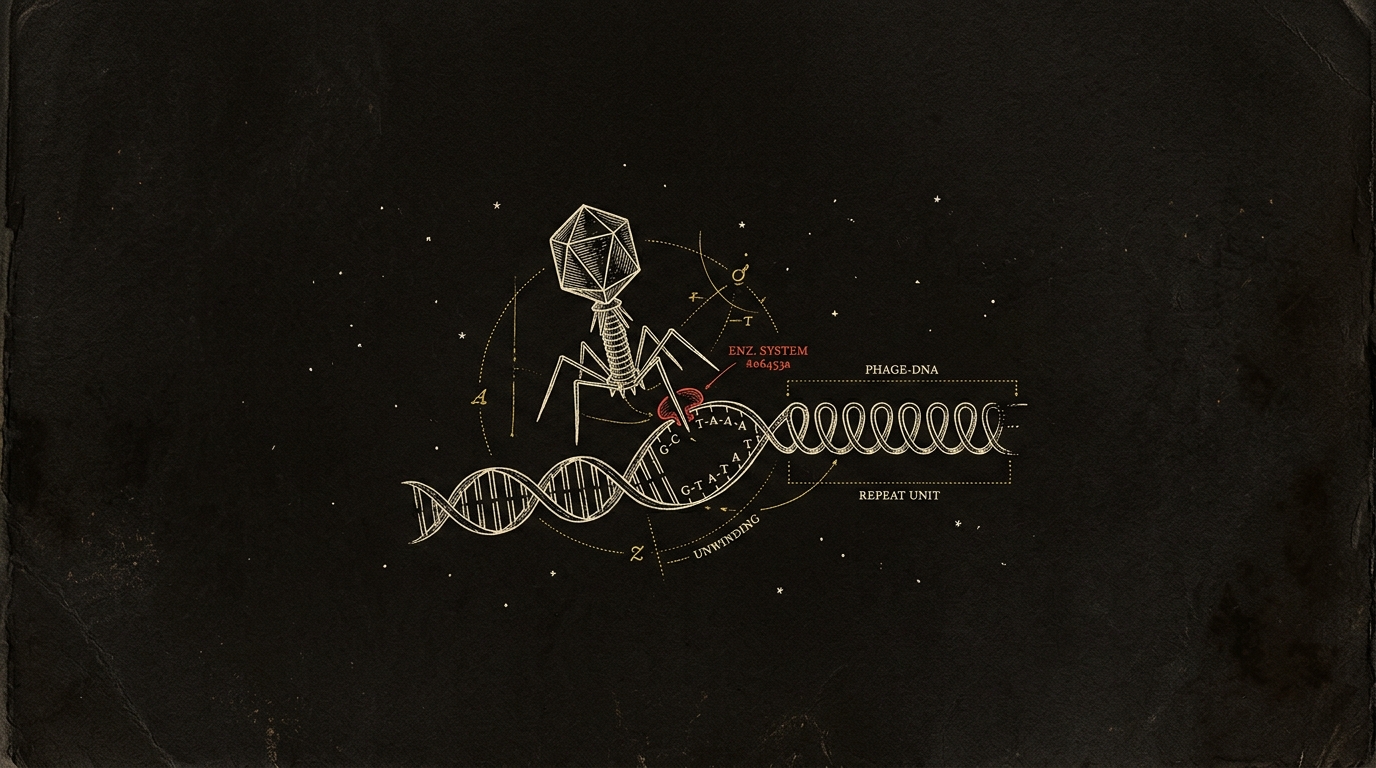
La realidad científica es sustancialmente más sutil, fascinante y exige un análisis desprovisto de ruido: una flota de agentes autónomos basados en Claude analizó 1.900 millones de grupos de proteínas metagenómicas, identificando una familia biológica natural hasta ahora desconocida en fagos gigantes (jumbo bacteriophages), bautizada como ART (Array-Associated Reverse Transcriptases). Posteriormente, experimentos de laboratorio húmedo (wet lab) confirmaron que sus matrices de repeticiones no son secuencias inertes, sino que se transcriben activamente y se procesan en pequeños fragmentos de ARN.
¿Estamos ante el sucesor de CRISPR, ante una nueva arquitectura de escritura genética o ante un mecanismo viral de evasión aún incomprendido? En este análisis desgranamos la maquinaria de ART, su contraste con la edición génica moderna, sus limitaciones insalvables a día de hoy y el impacto estructural que este hito proyecta sobre las carreras científicas y la industria biotecnológica.
1. El estado del arte de CRISPR: Dónde estamos realmente
Para calibrar cualquier pretendida “herramienta tipo CRISPR”, es imprescindible entender la frontera técnica de la edición genética actual y las barreras biofísicas que aún no hemos resuelto:
        CRISPR-Cas9/Cas12             Base Editing (CBE/ABE)           Prime Editing (PE)
     [ Endonucleasa / Corte ]        [ Desaminasa + Nickasa ]      [ Cas9n + RT + pegRNA ]
               │                                │                             │
         Rotura Doble                      Transición                    Escritura local
         Hebra (DSB)                    de bases C/T, A/G                 sin rotura DSB
               │                                │                             │
      Indels por NHEJ vs               Ventana estrecha y             Enzima pesada (~6 kb),
Infección posmitótica mutaciones bystander límite de empaquetado AAV- CRISPR-Cas convencional (Clase 2: Cas9, Cas12a):
- Mecanismo: Endonucleasas dirigidas por ARN guía que reconocen una secuencia adyacente al protoespaciador (PAM, como
5'-NGG-3') y provocan una rotura de doble hebra (DSB) en el ADN diana. - El cuello de botella celular: La enzima solo corta; la reparación corre a cargo de la célula. Vía NHEJ (Non-Homologous End Joining), genera inserciones o deleciones estocásticas (útiles para silenciar genes, pero no para corregirlos). La reparación homóloga dirigida (HDR) permite introducir secuencias exactas con un molde externo, pero es prácticamente ineficaz en células posmitóticas y conlleva el riesgo de translocaciones cromosómicas masivas o p53-toxicidad.
- Mecanismo: Endonucleasas dirigidas por ARN guía que reconocen una secuencia adyacente al protoespaciador (PAM, como
- Editores de Bases (Base Editors):
- Acoplan desaminasas de citidina o adenina a variantes catalíticamente inactivas (dCas9) o nickasas (nCas9). Permiten conversiones directas de C a T o de A a G sin rotura de doble hebra, pero no pueden insertar, borrar secuencias ni modificar pares fuera de una ventana bioquímica muy estrecha, padeciendo mutaciones accidentales adyacentes (bystander edits).
- Edición Primaria (Prime Editing):
- La referencia actual para la “escritura” genética de precisión. Combina una nickasa Cas9 con una transcriptasa inversa (RT) de origen retroviral (típicamente M-MLV) y un ARN guía extendido (pegRNA) que actúa a la vez como sensor de localización y molde de copia.
- El problema de empaquetamiento: Es un complejo macromolecular sobredimensionado (~6 kb). Supera con creces el límite de carga de los vectores adenovirales asociados (AAV, ~4.7 kb), habituales en terapia génica clínica, y sus tasas de inserción in vivo son notablemente heterogéneas.
- Sistemas de Recombinación Guiada (Bridge RNA / IS110):
- Descubiertos recientemente en elementos transponibles procariotas, emplean ARNs con bucles biespecíficos para reprogramar inversiones e inserciones de fragmentos kilobásicos enteros sin necesidad de roturas de doble hebra ni moldes de ADN donante.
2. Anatomía molecular del sistema ART
El sistema ART no es un mecanismo de defensa bacteriano, sino un operón críptico codificado en los genomas de fagos gigantes (virus bacterianos con cápsides complejas y genomas de ADN bicatenario que superan los 200 a 500 kb).
   ┌─────────────────────── Operón Genómico ART ───────────────────────┐
   │                                                                   │
   │   [ RT N-Terminal Largo ]    [ Gen Compañero ]   [ Tándem Repeats ]│
   │   Polimerasa ARN a ADN        Función críptica    Matrices ~200 pb │
   │   con dominio atípico         conservada          No codificante   │
   └───────────────────────────────────────────────────────────────────┘
                                   │
                                   ▼
             Transcripción y Procesamiento Lítico
             ────────────────────────────────────
             Producción masiva de ARNs cortos discretos
             (Hasta 8% del transcriptoma viral a 15 min)
La arquitectura del locus ART se articula en tres módulos fundamentales:
- Transcriptasa Inversa (RT) hipermodificada:
- Una ADN polimerasa dependiente de ARN. A diferencia de las RTs de retrotransposones procariotas o retrons, las enzimas ART portan una extensión N-terminal inusualmente extensa, cuya estructura no homologa con dominios catalíticos conocidos. Se hipotetiza que funciona como plataforma de ensamblaje multimérico, sensor de interacción con el huésped o módulo de reconocimiento de ácidos nucleicos.
- Gen compañero conservado (Partner Gene):
- Un marco de lectura abierto (ORF) adyacente a la RT, invariablemente asociado a este operón. Su ausencia de firmas nucleolíticas clásicas intriga a los bioquímicos: podría tratarse de una chaperona específica, un factor de procesión o una proteína de blindaje frente a defensas bacterianas.
- Matriz de repeticiones en tándem (Tandem Repeat Array):
- El elemento estructural que activó la alarma en la IA: una serie de repeticiones de ADN de ~200 pares de bases situadas en una región no codificante intergénica. A diferencia de los espaciadores de CRISPR (que miden entre 28 y 37 pb), estas unidades son un orden de magnitud mayores.
- Validación experimental en laboratorio (Wet Lab):
- Al infectar cultivos celulares de Staphylococcus con fagos portadores del sistema, los investigadores de Anthropic comprobaron mediante secuenciación de ARN que la matriz no es silenciosa: se transcribe de forma masiva en fases muy tempranas del ciclo lítico, procesándose en ARNs cortos y bien definidos que llegan a constituir hasta el 8% del total del ARN del virus a los 15 minutos de la infección.
3. Matriz comparativa: CRISPR tradicional vs. Sistema ART
La analogía mediática entre CRISPR y ART surge de la presencia de matrices de repeticiones transcritas a ARN. Sin embargo, en términos mecánicos y funcionales, representan lógicas evolutivas opuestas:
| Propiedad Bioquímica | CRISPR-Cas (Clase 2: Cas9 / Cas12) | Sistema ART (Fagos Gigantes) |
|---|---|---|
| Acción catalítica primaria | Endonucleasa (Hidrólisis de enlaces fosfodiéster de ADN). | Polimerasa dependiente de ARN (Síntesis de ADN complementario a partir de ARN). |
| Rol biológico del ARN | Guía de direccionamiento espacial vía apareamiento de Watson-Crick. | Molde de síntesis y/o modulador estructural (función exacta en estudio). |
| Nicho biológico y propósito | Inmunidad adaptativa bacteriana (El huésped destruye al invasor). | Ofensiva o replicación fágica (El virus opera dentro del huésped infectado). |
| Estructura del Array | Repeticiones idénticas cortas (28-37 pb) intercaladas con espaciadores únicos. | Repeticiones largas en tándem (~200 pb) estructuradas en bloques no codificantes. |
| Requisito de motivo PAM | Indispensable para el desenrollado de la doble hélice y activación catalítica. | No identificado / Inexistente (las RTs clásicas se guían por cebadores). |
| Efecto sobre el genoma | Generación de roturas de doble hebra (DSB) o mallas monocatenarias. | Polimerización de novo de ADN monocatenario o bicatenario. |
4. Análisis agnóstico y limitaciones insalvables a día de hoy
Calificar hoy a ART de “herramienta de edición genética” constituye una extrapolación no justificada por la evidencia experimental. Desde una postura científica escéptica, los obstáculos son determinantes:
                            [ OBSTÁCULOS CRÍTICOS ]
                                       │
     ┌──────────────────┬──────────────┴─────┬──────────────────┐
     ▼                  ▼                    ▼                  ▼
[Ausencia de      [Fidelidad y Tasa    [Barrera de Entrega  [Incompatibilidad
 Nucleasa/Corte]   de Error de la RT]   y Tamaño (Delivery)] Eucariota/Cromatina]
 No hay evidencia   Las RT carecen de    Genomas de fago      Evolucionado para
 de integración ni  exonucleasa 3'-5':   gigante generan      el citoplasma bacteriano;
corte dirigido mutagénesis azarosa complejos > 5 kb sin NLS ni acceso histonas- Inexistencia de actividad de integración o corte dirigida:
- Que una enzima sea capaz de sintetizar ADN a partir de ARN no significa que sepa dónde insertarlo en un cromosoma eucariota. Los retrotransposones y los retrovirus usan integrasas o endonucleasas acopladas para abrir el ADN genómico. ART carece de endonucleasas demostradas en su operón; sin un mecanismo de anclaje e inserción ortogonal, no es un editor, sino una polimerasa solitaria.
- La baja fidelidad intrínseca de las transcriptasas inversas:
- Las RTs carecen del dominio con actividad exonucleasa correctora 3’ a 5’ (proofreading). Su tasa de error natural se sitúa entre 1 error por cada 10.000 o 100.000 pares de bases sintetizados. Trasladar una RT no optimizada a una terapia génica clínica introduciría un riesgo inaceptable de mutagénesis aleatoria en el paciente.
- El problema biofísico de la entrega (Delivery):
- Los fagos gigantes reciben ese nombre porque sus proteínas son masivas. Si el complejo formado por la RT de largo N-terminal, el gen compañero y la maquinaria accesoria supera los 4.5 o 5 kb, quedará automáticamente descartado para su encapsulación en vectores virales estándar (AAV) y presentará dificultades severas para formularse en nanopartículas lipídicas (LNP).
- Barrera citoplasma procariota vs. cromatina eucariota:
- ART evolucionó en el citoplasma no compartimentado de bacterias infectadas. En una célula humana, cualquier herramienta debe atravesar la envoltura nuclear (requiriendo señales de localización nuclear, NLS), desenrollar cromatina compactada en nucleosomas y no ser silenciada por mecanismos epigenéticos de metilación.
5. El potencial latente: ¿Qué significaría si se descifra?
Si las investigaciones de los próximos años demuestran que el sistema ART puede ser programado y dirigido a secuencias específicas, las implicaciones biotecnológicas serían revolucionarias:
- El Santo Grial de la “escritura pura” sin rotura de doble hebra:
- La edición genética moderna sueña con deshacerse de Cas9 y sus roturas bicatenarias. El Prime Editing demostró el principio conceptual, pero lo hizo uniendo piezas artificiales de procedencias inconexas. Si la naturaleza ya diseñó en fagos un sistema donde una transcriptasa inversa trabaja de forma nativa y eficiente con moldes de ARN procedentes de matrices repetitivas, la ingeniería de proteínas podría derivar un escritor de ADN compacto, preciso y directo.
- Grabadores moleculares en células vivas (DNA Flight Recorders):
- En lugar de editar para curar, el sistema podría usarse para vigilar. Imaginemos células madre o linfocitos T modificados para que, ante señales inflamatorias o eventos de división celular, transcriban una unidad del array y la RT archive esa información en una región neutra del genoma. Las células registrarían su propio historial biológico en formato ADN, legible posteriormente por secuenciación.
6. Perspectivas profesionales: Cómo lo leen los especialistas
                                [ LECTURA MULTIDISCIPLINAR ]
                                              │
         ┌───────────────────────────┬────────┴───────────────────┬───────────────────────────┐
         ▼                           ▼                            ▼                           ▼
  [Bioinformático]          [Biólogo Molecular]          [Biólogo Sintético]          [Biólogo de Campo]
  "Muerte de heurísticas     "¿Quién corta el ARN?        "Oportunidad de domesticar   "Carrera armamentística:
   rígidas; auge de           Bioquímica de cebado         un escritor sin DSB y        ¿evasión de defensas
   agentes autónomos"         y estructura Cryo-EM"        grabadores celulares"        o hipermutación fágica?"
A. El Bioinformático y Biólogo Computacional
- El fin de las heurísticas de libro de texto: Durante décadas, las búsquedas de sistemas CRISPR se basaron en reglas duras (matrices de 28 a 37 pb acopladas a firmas cas). ART fue invisible porque sus repeticiones son de ~200 pb y no se asemejan a nada catalogado.
- El nuevo flujo de trabajo: El rol del bioinformático transmuta: ya no se trata de encadenar scripts estáticos de BLAST o perfiles HMM en pipelines rígidos, sino de orquestar agentes heurísticos autónomos con capacidad de inspección espacial y sintenia no restringida.
B. El Biólogo Molecular y Bioquímico
- Las preguntas mecánicas de rigor:
- ¿Qué enzima procesa el transcrito primario en ARNs discretos? ¿Posee el N-terminal de la RT actividad ribonucleasa intrínseca o el fago secuestra endorribonucleasas del huésped como RNasa III o E?
- ¿Cuál es el mecanismo de cebado? ¿Usa el extremo 3’-OH de un ARN plegado en horquilla (similar a los retrons y su enlace 2’-5’ inusual) o requiere una nickasa celular?
- Estructura terciaria: La prioridad indiscutible es expresar el complejo recombinante y resolver su crio-microscopía electrónica (Cryo-EM) o contrastarlo con modelos de plegamiento multimérico (AlphaFold 3, Boltz-1).
C. El Biólogo Sintético
- Ingeniería de componentes desacoplados: ¿Es posible sustituir la secuencia de las repeticiones de ~200 pb por moldes sintéticos de interés terapéutico? Si el sistema tolera sustituciones en el molde sin perder afinidad por la RT, estaríamos ante un chasis programable para síntesis dirigida de ADN in vivo.
D. El Biólogo de Campo y Ecólogo Microbiano
- Guerra evolutiva en la materia oscura biológica: Los fagos gigantes construyen estructuras proteicas pseudonucleares dentro de la bacteria para aislar su ADN replicativo del ataque de nucleasas. ART podría ser un arma de contra-defensa (una factoría de señuelos de ARN que satura las defensas bacterianas) o un sistema análogo a los DGR (Diversity-Generating Retroelements), diseñado para mutar aceleradamente las proteínas de anclaje de la cola del virus y sortear las resistencias bacterianas en ecosistemas ambientales complejos.
7. Impacto en las carreras científicas
La metodología que propició este hallazgo redefine las competencias demandadas en los profesionales de las ciencias biológicas:
- Revalorización crítica del laboratorio húmedo (Wet Lab):
- Cuando la computación agéntica puede proponer 3.500 sistemas biológicos candidatos en menos de 24 horas, el factor limitante ya no es la generación de hipótesis, sino su demostración experimental. Los bioquímicos expertos en purificación de complejos proteicos rebeldes, enzimología cinética y ensayos in vitro verán disparada su demanda frente a bioinformáticos meramente descriptivos.
- Aparición del “Ingeniero de Agentes Científicos”:
- Se demandarán biólogos computacionales capaces de entrenar, contextualizar y guiar enjambres de modelos de lenguaje sobre terabytes de lecturas genómicas no anotadas, detectando sesgos y alucinaciones biológicas antes de ordenar la síntesis de ADN.
- El declive de la metagenómica descriptiva:
- La era de publicar papers reportando “10.000 nuevos genomas bacterianos sin caracterizar” ha concluido. El listón académico y de la industria exige ahora desentrañar la lógica mecanicista de los operones atípicos descubiertos.
8. Materiales, reactivos e instrumentación que verán un repunte de demanda
La persecución y caracterización de operones como ART impulsará sectores concretos del mercado de suministros de laboratorio:
                  [ DEMANDA EN LA CADENA DE SUMINISTRO ]
                                     │
     ┌──────────────────────┬────────┴──────────────┬──────────────────────┐
     ▼                      ▼                       ▼                      ▼
[Síntesis de ADN       [Secuenciación de       [Robótica de           [Cryo-EM y Cómputo
 Repetitivo y Complejo] Lectura Larga]          Manipulación Líquida]   GPU Bio-Molecular]
 Superar horquillas de  Nanopore y PacBio HiFi: Cribado masivo de       Resolución estructural
 200 pb con polimerasas ensamblaje de arrays    candidatos en placas    y predicción de
enzimáticas (TdT) que Illumina fragmenta de 384/1536 pocillos complejos ARN-proteína- Síntesis enzimática de ADN complejo:
- Las matrices de repeticiones en tándem son extraordinariamente difíciles de sintetizar químicamente (por tecnología fosforamidita clásica) debido a la acumulación de estructuras secundarias estables. Empresas pioneras en síntesis enzimática con transferasas terminales (TdT) captarán cuota de mercado para sintetizar estos arrays sin errores de deslizamiento.
- Secuenciadores de lectura larga (Long-Read Sequencing - Oxford Nanopore y PacBio):
- La secuenciación corta tradicional (Illumina 150 pb) fragmenta y destruye la resolución de matrices repetitivas de ~200 pb en fagos gigantes. Las lecturas continuas nativas de 10 a 50 kb se convierten en una necesidad absoluta para reconstruir genomas virales intactos.
- Kits de secuenciación de ARN pequeño enriquecido:
- Detección de extremos modificados (5’-fosfato, 3’-fosfato cíclico, 2’-O-metilo) en los transcritos de ARN procesados, mediante tratamientos enzimáticos de reparación previa a la construcción de librerías.
- Automatización y manipuladores de líquidos de alto rendimiento:
- Si los agentes computacionales identifican cientos de operones candidatos, la mesada humana colapsa sin sistemas robóticos (Tecan, Hamilton, Opentrons) configurados para clonación celular y cribados enzimáticos automatizados.
- Microscopía Cryo-EM y clústeres de inferencia estructural:
- Horas de microscopio electrónico de transmisión criogénica para resolver complejos heterogéneos que no cristalizan, junto con nodos de cómputo GPU dedicados al modelado de interacciones ARN-proteína de alta densidad.
Conclusión
El sistema ART identificado por Claude no es un CRISPR 2.0 listo para curar patologías humanas, pero representa un triunfo conceptual mayúsculo: la confirmación de que existen familias enteras de maquinaria biológica activa ocultas a las herramientas bioinformáticas tradicionales.
Su importancia radica en recordarnos que el catálogo biológico de la naturaleza está lejos de agotarse y que la confluencia entre inteligencia artificial autónoma y experimentación rigurosa de laboratorio es el camino definitivo hacia la próxima revolución biotecnológica.
Fuentes y referencias
- Anthropic Research: Autonomous AI agents discover reverse transcriptases with tandem repeat arrays — Preprint original sobre el hallazgo del sistema ART en fagos gigantes y su validación experimental preliminar. Fecha: 2026-09-23. Tipo: Paper oficial / Preprint.
- alphaXiv: Autonomous AI agents discover reverse transcriptases with tandem repeat arrays — Repositorio y discusión comunitaria del preprint técnico liderado por Peter H. Yoon et al. Fecha: 2026-09-23. Tipo: Preprint técnico.
- The Scientist: AI agents uncover novel CRISPR-like systems in bacteriophages — Análisis y reacciones de la comunidad científica sobre la implicación del hallazgo del sistema ART. Fecha: 2026-09-24. Tipo: Artículo científico y divulgación.
- Nature Biotechnology: Programmable genome editing without double-strand breaks — Revisión fundamental sobre el estado del arte de Base Editing, Prime Editing y sus barreras moleculares. Fecha: 2024-06-15. Tipo: Revisión académica.
- Nature: Bridge RNAs direct programmable and modular DNA recombination — Publicación fundacional sobre sistemas IS110 y recombinasas dirigidas por ARN no canónicas. Fecha: 2024-06-26. Tipo: Paper oficial.